Láser para la onicomicosis
Claudia Maria Duarte de Sá Guimarães, Taissa Vieira Machado Vila y Sergio Bittencourt-Sampaio Av. Nossa Sra. de Copacabana, 435, sala 903, Río de Janeiro, Brasil Laboratorio de Biología Celular de Hongos, Instituto de Biofísica Carlos Chagas Filho, Universidad Federal de Río de Janeiro, Río de Janeiro, Brasil Departamento de Histología y Embriología, UFRJ, Facultad de Medicina Souza Marques, Av. Nossa Senhora de Copacabana 605/907, CEP 22050-902 Río de Janeiro, RJ, Brasil
Resumen
La onicomicosis es una infección fúngica frecuente que afecta a la lámina ungueal o al lecho ungueal y representa aproximadamente el 50% de las patologías que afectan a las uñas (Ghannoum Microbiology 157:3232–42, 2011). Su tratamiento sigue siendo un desafío, aunque se lograron avances con la introducción de nuevos fármacos antifúngicos en la década de 1990, ya que muchos casos persisten durante décadas sin curación clínica (Sigurgeirsson J Europ Acad Dermatol Venerol 24:679–684, 2010). La mayoría de los casos son causados por hongos dermatofitos; sin embargo, en los últimos años ha aumentado progresivamente el registro de onicomicosis causada por hongos no dermatofitos (levaduras y hongos filamentosos) que no responden a los agentes antifúngicos (Ranawaka et al. Dermatol Online Journal 18(1):7, (2012); Hwang et al. Ann. Dermatol 24(2):175–180, 2012). Los estudios de fotobiomodulación y fotoinactivación indican que los láseres del rango del espectro electromagnético infrarrojo (870, 930, 1064 nm), cuando se aplican con energía bioquímica, pueden mejorar la microcirculación, estimular el metabolismo de las células e inhibir la multiplicación fúngica y bacteriana mediante su acción sobre la pared de los microorganismos, al alterar las cargas eléctricas y favorecer la formación de ROS (radicales de oxígeno singulete, radicales libres). Esta técnica puede asociarse con la aplicación en las uñas del láser de CO2 fraccional para que, en un sistema de liberación de fármacos, pueda combinarse con agentes antifúngicos o antibacterianos a fin de actuar de forma sinérgica y reducir así el número de sesiones del láser de 1064 nm de submilisegundo.
Palabras clave OnicomicosisAntifúngicoDermatofitoNo dermatofitoBiopelículaFotobiomodulaciónLáser Nd:YAGLáser de CO2Liberación de fármacos
Introducción
La onicomicosis es una infección fúngica frecuente que afecta a la lámina ungueal o al lecho ungueal y representa aproximadamente el 50% de las patologías que afectan a las uñas (Ghannoum et al. 2000). Su tratamiento sigue siendo un desafío, aunque se lograron avances con la introducción de nuevos fármacos antifúngicos en la década de 1990, ya que muchos casos persisten durante décadas sin curación clínica (Sigurgeirsson 2010). Se estima que la tasa de curación clínica con medicamentos orales alcanza apenas algo más del 50% de los casos, en las estadísticas más optimistas, mientras que los tratamientos tópicos no alcanzan tasas de curación del 20% (Scher et al. 2007).
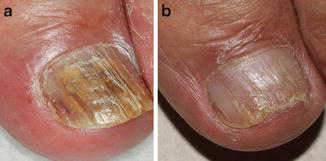
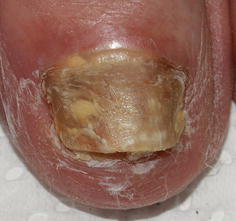
La onicomicosis puede complicar otros problemas de los pies en las personas mayores, afectar las interacciones sociales, dificultar empleos en los que hay contacto directo con el público y servir de reservorio de hongos potencialmente agresivos en individuos inmunodeprimidos. Algunos factores se consideran predisponentes, como la edad avanzada, la diabetes, la hiperhidrosis, el estado de inmunodepresión (tumores de origen hematológico, VIH/sida), la alteración de la circulación periférica y los traumatismos ungueales (calzado ajustado, atletas, etc.), el pie de atleta y los traumatismos por manicura o pedicura, además de los antecedentes familiares (probablemente por transmisión) y la psoriasis ungueal (fig. 1) (Pariser et al. 2013).
Conceptos básicos
Las uñas son láminas queratinizadas de consistencia endurecida situadas en los extremos distales de los dedos de las manos y de los pies. Las primeras señales de la estructura que dará lugar a las uñas aparecen cerca del final del primer trimestre de la vida fetal. La epidermis de las extremidades de los dedos comienza a proliferar y crecer en forma de línea curva hacia la dermis. Después, la lámina proliferativa se divide en segmentos formando el surco ungueal. Las células de la parte más profunda de este surco originan la matriz ungueal, donde las células superiores se queratinizan y forman la lámina o cuerpo de la uña. A medida que continúan las mitosis en la matriz, la lámina ungueal se desplaza por la superficie dorsal del dedo. Este proceso en las manos precede al de los pies. Así, aproximadamente en la semana 32, las uñas de las manos alcanzan los extremos de los dedos, mientras que en los pies esto solo ocurre alrededor de la semana 36 de la vida intrauterina.
La parte proximal de la uña se llama raíz, donde se localiza la matriz ungueal, que continúa en la parte expuesta denominada cuerpo. Las células de la matriz se queratinizan y, a diferencia de otras partes del cuerpo, no se desprenden; al contrario, se compactan y avanzan en el trayecto lineal de la lámina ungueal, donde permanecen incluidas. En la matriz también se encuentran células de Merkel y melanocitos. La dermis de esa parte proximal presenta papilas cortas. La matriz está firmemente unida a la dermis, de modo que, cuando se extrae la uña, no puede eliminarse toda la matriz. La raíz está cubierta por un pequeño pliegue cutáneo (pliegue ungueal proximal), que cubre una pequeña porción del cuerpo de la uña y constituye así el eponiquio, formado por queratina blanda.
Debajo del cuerpo de la uña, la epidermis se diferencia de otras regiones anatómicas por presentar solo la capa de Malpighi, sin células que contengan gránulos de queratohialina, existentes en la piel de todo el cuerpo. En este caso, la lámina ungueal realiza la función de la capa córnea. La porción proximal del lecho ungueal tiene una epidermis muy gruesa, que genera una imagen opalescente conocida como lúnula, más evidente en el pulgar y que puede aparecer en otros dedos (Montagna and Parakkal 1974). Allí se localizan las células responsables de la producción y el crecimiento de la uña (matriz ungueal). Sobre una capa de células prismáticas (basales) pueden encontrarse 6–10 capas de células poliédricas y 3–12 capas de células planas. Se supone que la coloración blanca se deriva de este grosor, que no permite la visión indirecta de la sangre dentro de los capilares (Bloom 1977; Weiss 1977; Montagna and Parakkal 1974; Snell 1985); sin embargo, la lúnula no siempre coincide con la ubicación de la matriz (Montagna and Parakkal 1974).
La lámina ungueal contiene un tipo de queratina muy rica en aminoácidos azufrados (queratina dura), lo que explica su estabilidad estructural y resistencia química. En esta región, las células tienen una membrana celular gruesa y están firmemente unidas entre sí, con una gran cantidad de tonofibrillas gruesas y birrefringentes, de 60 a 80 Å, en su interior, y rodeadas de material amorfo denso (Weiss 1977). En la superficie de la lámina ungueal hay surcos longitudinales muy evidentes en las personas mayores, pero rara vez están presentes en la población joven (Montagna and Parakkal 1974). A pesar de ser gruesa y compacta, la uña, al igual que el cabello, es más permeable al agua que el estrato córneo de la piel en general.
Debajo del cuerpo de la uña (lecho ungueal), la dermis descansa sobre el periostio de la falange. En este segmento, las papilas dérmicas forman crestas longitudinales y paralelas, que siguen el eje longitudinal de la uña. La vascularización es intensa, lo que proporciona el color rosa opaco observado a través de la lámina ungueal. Los bordes laterales están involucrados por pliegues cutáneos, los pliegues ungueales laterales, separados del lecho donde descansa el cuerpo de la uña. El lugar que establece la continuidad de la epidermis del dedo con el extremo distal del lecho ungueal se denomina hiponiquio, de donde emerge el borde libre de la uña.
Las uñas de las manos crecen de 0,5 a 1,2 mm por semana, mientras que las de los pies muestran una evolución más lenta (Snell 1985). Diversas afecciones pueden interferir en este crecimiento: ritmos circadianos (el crecimiento es mayor durante el día que durante la noche y mayor en verano que en invierno), grupo de edad (crecimiento muy reducido después de la séptima década), factores hormonales (que se aceleran durante el embarazo, se enlentecen con el hipotiroidismo, etc.), condiciones nutricionales y condiciones traumáticas.
Etiología y epidemiología
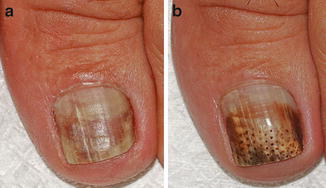
La mayoría de los casos de onicomicosis son causados por hongos dermatofitos, microorganismos que se encuentran en el suelo (geofílicos), los animales (zoofílicos) o los seres humanos (antropofílicos). Las especies antropofílicas son Trichophyton, Microsporum y Epidermophyton. Los dermatofitos pueden invadir tejidos queratinizados (capa córnea, cabello y uñas) y por ello se denominan microorganismos queratinofílicos. Los hongos no dermatofitos no son queratolíticos, por lo que se encuentran en el cemento intercelular o fijados en la queratina previamente destruida por los dermatofitos, por traumatismos o por otra enfermedad ungueal (Pariser et al. 2013; Hwang et al. 2012). Los hongos filamentosos no dermatofitos son más frecuentes en regiones tropicales (por ejemplo, Fusarium y Aspergillus), así como las levaduras (especialmente Candida spp.). Los hongos no dermatofitos han presentado una incidencia creciente y se consideran más difíciles de tratar, porque a menudo no responden a los agentes antifúngicos (fig. 2) (Ranawaka et al. 2012; Hwang et al. 2012).
Un estudio estadounidense a gran escala aisló hongos dermatofitos en el 59% de los casos y hongos no dermatofitos y levaduras en aproximadamente el 20% de los casos. Trichophyton rubrum y Trichophyton mentagrophytes se encuentran entre los dermatofitos más frecuentemente encontrados, mientras que Trichophyton tonsurans, Microsporum canis y Epidermophyton floccosum representaron el 0,8% de los dermatofitos. Entre los no dermatofitos aislados, Acremonium, Fusarium y Scopulariopsis spp. merecen destacarse, con frecuencias del 29,5%, 34,1% y 20%, respectivamente. Entre las levaduras, Candida parapsilosis representó el 66,7% y Candida albicans el 16,7% de los cultivos (Ghannoum et al. 2000).
Un estudio realizado en Río de Janeiro en 2001 evaluó a 2271 pacientes y diagnosticó a 400, correspondiendo estos diagnósticos a 264 uñas de las manos y 136 uñas de los pies, mediante examen micológico directo y cultivo; este estudio indicó la presencia de hongos dermatofitos en el 46,5% de los casos de onicomicosis en las uñas de los pies, Candida en el 49% de las uñas de las manos de mujeres y el 4,5% de hongos emergentes (no dermatofitos y otros microorganismos). Entre los hongos no dermatofitos capaces de causar onicomicosis se identificaron Scopulariopsis brevicaulis, Fusarium spp., Acremonium spp., Aspergillus spp., Scytalidium spp. y Onychocola canadensis (Araujo et al. 2003). Un estudio realizado en Sri Lanka registró onicomicosis causada por hongos no dermatofitos en el 45,8%, Candida spp. en el 34,1% y dermatofitos en el 20% de los casos. Esta variación de patógenos se atribuyó al contacto con el suelo, el hábito de caminar descalzo, la inmersión frecuente de las manos en agua y el clima húmedo y cálido. Los hongos no dermatofitos encontrados con mayor frecuencia fueron Aspergillus niger, Aspergillus flavus y Fusarium spp. La onicomicosis se acompañó de paroniquia en el 76% de los casos. Los hongos no dermatofitos representaron el 22% de las onicomicosis en la India, el 35,5% en Malasia, el 51,6% en Tailandia y el 68% en Pakistán (Ranawaka et al. 2012).
Fusarium spp. se ha destacado como patógeno de plantas y ocasionalmente puede infectar a animales y seres humanos. Puede encontrarse en el suelo, en las partes subterráneas y aéreas de las plantas, en sustratos orgánicos y en el agua, donde forma parte de la estructura de las biopelículas. En los seres humanos causa infecciones superficiales (como queratitis y onicomicosis), enfermedad invasiva local o infecciones diseminadas; estas últimas afectan a pacientes gravemente inmunodeprimidos (con neutropenia profunda y prolongada o inmunodeficiencia grave de células T) y a pacientes con enfermedades hematológicas, principalmente pacientes con leucemia aguda. Además, puede causar sinusitis alérgica en individuos inmunocompetentes y micotoxicosis en seres humanos y animales por la ingesta de alimentos contaminados por la toxina producida por estos hongos. Entre las 50 especies conocidas, 12 son capaces de causar infección, y la onicomicosis preexistente puede ser el origen de una fusariosis diseminada (Nucci et al. 2007).
Biopelículas
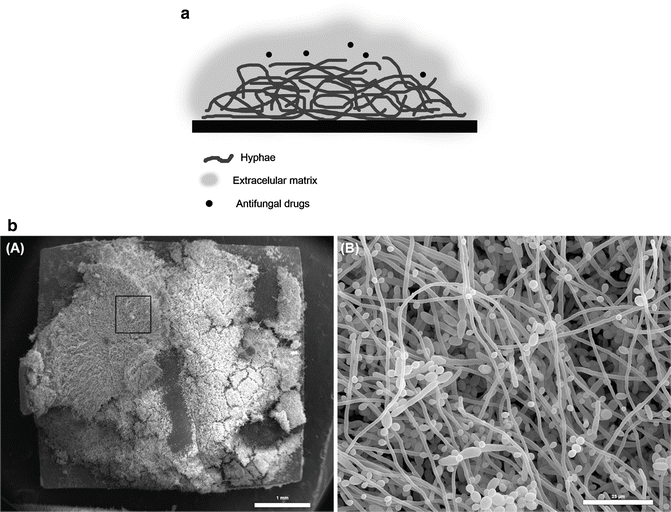
Desde el siglo XVII, las biopelículas se han descrito en múltiples sistemas. La mayoría de las bacterias crecen preferentemente como biopelículas en todos los ecosistemas acuáticos autosuficientes, y estas células bacterianas sésiles difieren profundamente de sus contrapartes planctónicas (células en suspensión) (Costerton et al. 1995). Las definiciones de biopelícula han evolucionado a lo largo de los años, paralelamente a los avances en biología y a los estudios de investigación sobre el tema. La definición utilizada hoy fue propuesta por Donlan y Costerton (2002), y describe una biopelícula como una comunidad microbiana en la que las células están conectadas a un sustrato, o entre sí, embebidas en una matriz de sustancias poliméricas extracelulares (producidas por ellas mismas) y que exhiben un fenotipo alterado en cuanto a la tasa de crecimiento y transcripción de genes (fig. 3) (Donlan and Costerton 2002).
En los hongos, la capacidad de colonizar superficies y formar biopelículas se demostró inicialmente para Candida albicans y Saccharomyces cerevisiae, en los años noventa y principios de los 2000 (Hawser and Douglas 1994; Reynolds and Fink 2001). Sin embargo, la creciente conciencia sobre la importancia de las biopelículas fúngicas puede observarse en el aumento del número de publicaciones que describen la formación de biopelículas por otras especies de Candida spp. (Bizerra et al. 2008; Lattif et al. 2010; Silva et al. 2011), así como por otras levaduras que causan infecciones oportunistas y neumonía en seres humanos, como Malassezia pachydermatis (Cannizzo et al. 2007), Rhodotorula sp. (Nunes et al. 2013), Trichosporon asahii (Di Bonaventura et al. 2006), Blastoschizomyces (D’Antonio et al. 2004), Pneumocystis spp. (Cushion et al. 2009) y Cryptococcus neoformans (Martinez and Casadevall 2007). Además, la capacidad de formar biopelículas también se ha demostrado en varios hongos filamentosos, como Aspergillus fumigatus (Mowat et al. 2009) y Fusarium spp. (Imamura et al. 2008); en hongos que causan micosis endémicas, como Histoplasma capsulatum (Pitangui et al. 2012), Paracoccidioides brasiliensis (Sardi et al. 2014) y Coccidioides immitis (Davis et al. 2002); y en zigomicetos, como Mucorales (Singh et al. 2011).
Biopelículas en dermatología
A pesar de que la participación de las biopelículas en las infecciones ungueales sigue siendo una discusión abierta, su implicación en otras infecciones dermatológicas, como acné, miliaria, dermatitis atópica y heridas, está bien aceptada, especialmente en relación con las biopelículas bacterianas (Vlassova et al. 2011).
Biopelículas en la onicomicosis
Durante el curso de la infección ungueal puede observarse la formación de una biomasa gruesa, con elementos fúngicos embebidos en una matriz extracelular (Burkhart et al. 2002). Varios factores, como la firme adhesión de los hongos a la lámina ungueal, la presencia de células persistentes y la dificultad de erradicar la infección, sugieren que las biopelículas son un factor importante en la patogenia de las onicomicosis (Nusbaum et al. 2012). Como complemento de esta hipótesis, se demostró in vitro la capacidad de formar biopelículas en el principal agente causal de la onicomicosis, el dermatofito Trichophyton sp. (Costa-Orlandi et al. 2014). Recientemente se ha establecido un modelo de formación de biopelículas en fragmentos de uñas humanas utilizando Candida albicans y Fusarium oxysporum (Vila et al. 2014), que puede ayudar a esclarecer la participación de las biopelículas en la patogenia de las onicomicosis y a validar la actividad antibiopelícula de nuevas moléculas y nuevos tratamientos (fig. 4).
Resistencia antifúngica asociada con biopelículas
Según la definición de biopelícula, las células que componen su estructura tienen un fenotipo alterado y difieren de las células planctónicas en la expresión de genes, en la tasa de crecimiento y, principalmente, en la susceptibilidad a los agentes antifúngicos. El aumento de la resistencia antifúngica en células de Candida spp. cultivadas como biopelículas, en relación con sus formas planctónicas, es el cambio de comportamiento más relevante desde el punto de vista médico (Ramage et al. 2002). Se han propuesto múltiples mecanismos para explicar la mayor resistencia antifúngica de la biopelícula, como la densidad celular, alteración de las dianas farmacológicas, expresión de bombas de eflujo de fármacos, la matriz extracelular y la presencia de células persistentes (Kuhn et al. 2002a; Lattif et al. 2011; Mukherjee and Chandra 2004; Perumal et al. 2007; Ramage et al. 2002, 2012).
Papel de la matriz extracelular de la biopelícula en la resistencia
En la mayoría de las biopelículas, la población de microorganismos corresponde al 10% de la masa total y la matriz extracelular (MEC) corresponde al 90%. La matriz consiste en un conjunto de diferentes biopolímeros responsables de mantener las células adheridas a la superficie y mantener la cohesión de la biopelícula, de retener las células y mantenerlas cerca, permitiendo así la comunicación célula-célula y la difusión de moléculas de señalización (Flemming and Wingender 2010).
La MEC, por definición, brinda protección a las células frente a factores ambientales, como la inmunidad del huésped y los agentes antifúngicos (Seneviratne et al. 2008). Uno de los componentes clave descritos de la MEC de C. albicans es un β-1,3-glucano responsable de secuestrar azoles, equinocandinas, pirimidinas y polienos (Nett et al. 2010a, b; Vediyappan et al. 2010), comportándose como una «esponja de fármaco» y contribuyendo al aumento de resistencia de las biopelículas de C. albicans (Nett et al. 2010a, b). El último estudio publicado sobre el tema sugiere que, además del β-1,3-glucano, un complejo polisacárido formado por manano-glucano (que es, de hecho, el polisacárido más abundante en la MEC de las biopelículas de C. albicans) también es capaz de unirse al fluconazol (y posiblemente a otros fármacos) y contribuye a la resistencia (Zarnowski et al. 2014). Este trabajo enfatiza que la mayoría de los polisacáridos de la MEC probablemente actúan como secuestradores de fármacos y contribuyen a la resistencia de la biopelícula a los agentes antifúngicos.
Además de los polisacáridos, el ADN extracelular presente en la MEC de las biopelículas de C. albicans también parece tener un papel en la resistencia a agentes no azólicos, ya que la adición de DNasa aumenta la actividad antibiopelícula de los agentes polienos y equinocandinas, pero no la actividad de los azoles (Martins et al. 2009, 2012).
Aunque los mecanismos de resistencia asociados con la menor susceptibilidad de las biopelículas a los antifúngicos disponibles no están completamente dilucidados, varios estudios muestran que las biopelículas de C. albicans, C. parapsilosis y C. tropicalis son resistentes a tratamientos con diferentes antifúngicos disponibles comercialmente, entre ellos fluconazol, nistatina, terbinafina, anfotericina B, voriconazol y ravuconazol (Ferreira et al. 2009; Kuhn et al. 2002b). Además, estudios in vitro con biopelículas de Fusarium spp. también destacan su menor susceptibilidad a los agentes antifúngicos comerciales anfotericina B, voriconazol, itraconazol y fluconazol (Mukherjee et al. 2012; Zhang et al. 2012).
Biopelículas de Candida spp.
El desarrollo in vitro de biopelículas de Candida spp. (sobre superficies abióticas) puede describirse didácticamente en cuatro etapas secuenciales: (1) adhesión, la fase inicial en la que las levaduras en suspensión y las que circulan (células planctónicas) se adhieren a la superficie; (2) una fase intermedia, relativa al desarrollo de la biopelícula; (3) una fase de maduración, en la que la matriz polimérica empapa completamente todas las capas de células adheridas a la superficie en una estructura tridimensional; (4) dispersión, en la que las células más superficiales abandonan la biopelícula y colonizan las zonas circundantes de la superficie (Chandra et al. 2001; Ramage et al. 2005; Seneviratne et al. 2008). Al final del desarrollo, la biopelícula consiste en una densa red de células en forma de levaduras, hifas y pseudohifas, empapada por una matriz extracelular polimérica y con canales de agua entre las células, que facilitan la difusión de nutrientes desde el entorno a través de la biomasa hasta las capas inferiores y que también permiten la eliminación de desechos (Chandra et al. 2001; Ramage et al. 2001, 2005).
Las biopelículas de Candida spp. formadas en modelos in vivo parecen seguir la misma secuencia de formación (Andes et al. 2004); sin embargo, la maduración ocurre más rápidamente y el grosor final es mayor en estas biopelículas que en las cultivadas en sistemas in vitro.
La arquitectura final de la biopelícula es variable y depende, en parte, del sustrato sobre el que se forma y de las condiciones de crecimiento, como el medio de cultivo utilizado (in vitro), concentración y tipos de azúcares, presencia de proteínas séricas, pH y temperatura (Kumamoto 2002; Seneviratne et al. 2008).
Biopelículas de Fusarium spp.
Las especies del género Fusarium son saprófitas del suelo y patógenos importantes de plantas y seres humanos. La forma clínica de la fusariosis depende del estado inmunitario del huésped. En individuos inmunocompetentes, la queratitis y las onicomicosis son las infecciones más comunes. En individuos inmunodeprimidos, la fusariosis diseminada es la segunda infección fúngica filamentosa más común y afecta particularmente a pacientes tratados con corticosteroides a altas dosis y a pacientes con neutropenia grave, con una tasa de mortalidad de hasta el 100% (Nucci and Anaissie 2007). Fusarium spp. es un agente causal importante de queratitis microbiana, y se ha sugerido la formación de biopelículas como factor contribuyente en brotes recientes, asociados principalmente con el uso de lentes de contacto (Mukherjee et al. 2012). Fusarium spp. también se aísla comúnmente como agente causal en onicomicosis (de Araújo et al. 2003; Morales-Cardona et al. 2014). En las uñas, las células fúngicas forman biomasas fúngicas gruesas, con elementos fúngicos embebidos en una matriz extracelular (Burkhart et al. 2002); este comportamiento sugiere la participación de biopelículas en la patogenia de la onicomicosis (Nusbaum et al. 2012). En el hemisferio norte, la onicomicosis causada por dermatofitos, especialmente T. mentagrophytes y T. rubrum, es más prevalente (Ghannoum et al. 2000). Sin embargo, en países más cálidos y húmedos como Brasil, la incidencia de hongos filamentosos no dermatofíticos (como Fusarium spp.) y levaduras (como Candida spp.) como agentes causales de estas infecciones es muy significativa (de Araújo et al. 2003; Morales-Cardona et al. 2014). Estos datos son extremadamente relevantes ya que, mientras la mayoría de los dermatofitos son sensibles a la terbinafina y los azoles comúnmente utilizados en el tratamiento de las onicomicosis (ketoconazol, clotrimazol y fluconazol), Fusarium spp. a menudo es resistente a los antifúngicos disponibles (Bueno et al. 2010; Ortoneda et al. 2004).
Diagnóstico
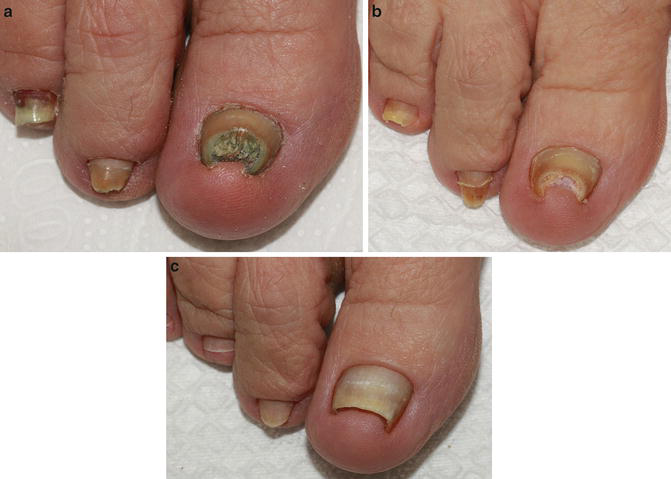
El diagnóstico de onicomicosis implica investigar la afectación de la unidad ungueal (lámina ungueal, lecho ungueal y tejidos periungueales). Los dermatofitos afectan más las uñas de los pies que las de las manos, donde las infecciones por Candida spp. son más frecuentes. El examen físico debe ser cuidadoso para registrar todas las unidades ungueales involucradas y observar los signos clínicos de onicomicosis: onicólisis, material debajo de la lámina ungueal, hiperqueratosis subungueal, cambio de color (blanco o amarillo, marrón) y la intensidad de destrucción de la lámina ungueal (fig. 5) (Pariser et al. 2013).
Evaluación clínica
La evaluación clínica comienza recopilando información como edad, sexo, presencia de enfermedades vasculares, diabetes, hipertensión, número de uñas infectadas, duración de la infección, antecedentes de tratamientos previos, tipo de onicomicosis, porcentaje de afectación ungueal, grosor de la uña, presencia de dermatofitoma, afectación de la matriz y afectación exclusivamente lateral (Ghannoum et al. 2000; Scher et al. 2007). En Brasil también es necesario incluir los antecedentes familiares de onicomicosis y el hábito de retirar las cutículas durante la manicura, lo que facilita la afectación de las uñas con infecciones mixtas (bacterianas y fúngicas). El examen de las zonas de intertrigo ayuda a la identificación y tratamiento de los reservorios fúngicos. Los individuos con antecedentes familiares de diabetes, síndrome metabólico, problemas de circulación periférica o inmunodeficiencia deben ser tratados por un equipo multidisciplinario. Los individuos jóvenes de 20 a 30 años con infección crónica difícil de tratar deben ser investigados por onicomicosis familiar, debido a la contaminación de las uñas en la infancia, el uso de baños con familiares contaminados o vestuarios, y a hongos resistentes al tratamiento tradicional.
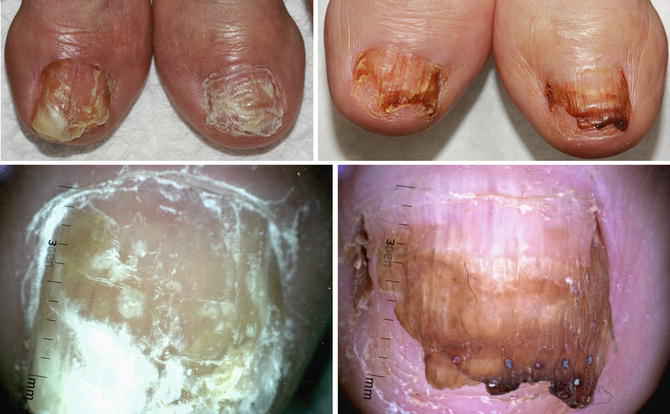
La identificación de la presentación clínica es importante para la elección de un enfoque terapéutico adecuado para cada caso (Scher et al. 2007). Las manchas blanco-amarillas o naranja-marrón pueden estar causadas por hongos que no responden al medicamento utilizado, como en el caso de los hongos no dermatofitos. Las manchas marrones son comunes en el quinto dedo del pie y deben diferenciarse del melanoma ungueal (aunque estas dos patologías pueden ocurrir al mismo tiempo). Los pacientes con onicomicosis crónica deben ser examinados en busca de signos que indiquen infección activa, incluso si el cultivo es negativo:
- Cambio de más del 10% de la lámina ungueal compatible con infección causada por dermatofitos mediante dermatoscopia
- Presencia de manchas blancas, amarillas, naranjas o marrones de las láminas en la uña
- Onicólisis lateral con detritos
- Hiperqueratosis lateral en la lámina o el lecho ungueal (fig. 6) (Ortiz et al. 2014)
Los siguientes son algunos hongos que pueden causar melanoniquia: Scytalidium, Scopulariopsis, Aspergillus, Fusarium, Trichophyton rubrum, Trichophyton mentagrophytes, Trichophyton soudanense, Candida albicans, Candida tropicalis, Curvularia, etc. (Finch et al. 2012).
Diagnóstico diferencial
- Contacto irritante — esmaltes, acrílicos o uñas artificiales
- Traumatismo ungueal — atletas, contusiones
- Psoriasis — infección secundaria por hongo
- Liquen plano
- Neoplasias — subungueales
- Infección bacteriana — bacterias grampositivas
Clasificación clínica
- Onicomicosis subungueal distal y lateral — infección mixta por Candida y bacterias, dermatofitos
- Onicomicosis subungueal proximal — afecta la base de la uña y puede estar causada por hongos del género Fusarium spp.
- Onicomicosis blanca superficial — T. mentagrophytes
- Onicomicosis endónice — dermatofitos
- Onicomicosis total — dermatofitos e infecciones mixtas con hongos no dermatofitos (Pariser et al. 2013; Hwang et al. 2012; Carney et al. 2011)
Factores pronósticos
Las onicomicosis están bajo la influencia de factores que hacen que el pronóstico sea sombrío. Actúan empeorando la infección ungueal. Sus características son:
Huésped — circulación periférica alterada, diabetes e inmunodepresión (figs. 7 y 8)
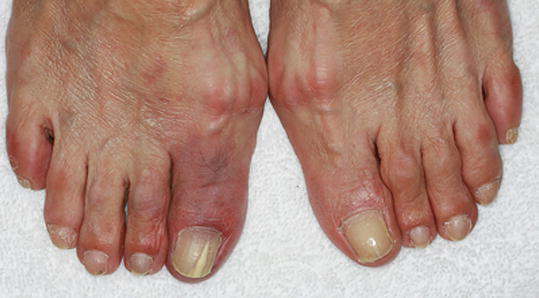
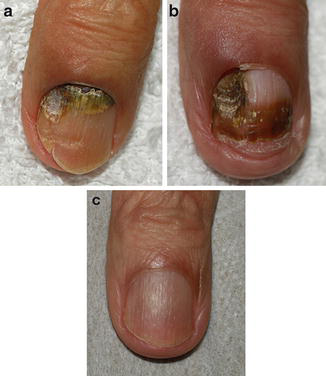
Uñas — hiperqueratosis mayor de 2 mm, enfermedad lateral, dermatofitoma (biopelícula), afectación de más del 50% de la lámina ungueal, crecimiento lento de las uñas, onicomicosis distrófica total, afectación de la matriz y onicólisis grave
Microorganismo — hongos filamentosos no dermatofitos, levaduras e infecciones mixtas (Carney et al. 2011)
Clínicamente no es posible identificar ni diferenciar la onicomicosis causada por dermatofitos, hongos filamentosos no dermatofitos o levaduras (Ranawaka et al. 2012). La toma de muestras se realiza con instrumentos estériles, con curetaje después de cortar parte del borde libre de la uña, con curetaje de la lámina ungueal cuando se sospecha onicomicosis blanca superficial, o con muestras de la uña y el lecho ungueal cuando la afectación está más cerca de la matriz. El material se recoge después de limpiar la uña con alcohol, y luego se almacena y transporta en un recolector estéril. Parte de este material se utilizará para examen directo y otra parte para cultivo en medio de agar Sabouraud. El examen directo, aunque inespecífico, ayuda al diagnóstico diferencial de otras enfermedades, como psoriasis o liquen plano, aunque pueden producirse infecciones bacterianas o fúngicas secundarias en relación con las otras patologías inflamatorias. Es importante informar al laboratorio cuando existe la necesidad de investigar un hongo no dermatofítico o bacterias, para que el material pueda cultivarse en un medio adecuado.
El cultivo es un método considerado la prueba de referencia para el diagnóstico de onicomicosis en 3–4 semanas, aunque puede mostrar un falso negativo en el 15% de los casos (Pariser et al. 2013; Liu et al. 2000). El aislamiento de un hongo no dermatofito o levadura puede considerarse contaminación ambiental o contaminación de la microbiota local. La recomendación para el diagnóstico de estos patógenos se basa en la falta de crecimiento del hongo dermatofito en cultivo y el crecimiento de cinco colonias del mismo microorganismo en dos muestras consecutivas (Araujo et al. 2003; Ranawaka et al. 2012).
El examen mediante tecnología de amplificación de ácidos nucleicos (PCR) ha ofrecido la oportunidad de mejorar la calidad y rapidez del diagnóstico de dermatofitos, en hasta 4 h. Identifica especies y subespecies de dermatofitos y los distingue de los no dermatofitos y Candida spp., y no requiere microorganismos viables para la prueba (Liu et al. 2000).
Tratamiento
Tratamiento tópico y sistémico
El tratamiento de las onicomicosis enfrenta varias dificultades, entre ellas la necesidad de seguimiento a largo plazo, los efectos secundarios de los medicamentos sistémicos y la dificultad de llevar el medicamento a la zona diana que debe tratarse (Vural et al. 2008). La terapéutica tradicional de las onicomicosis consiste en cuidados paliativos, desbridamiento químico o mecánico (Chiacchio et al. 2004) y uso de medicamentos sistémicos o tópicos. La definición de «curación completa» de la agencia reguladora estadounidense, Food and Drug Administration (FDA), para la evaluación de resultados clínicos, es resultados negativos en el examen directo y cultivo, así como una apariencia completamente normal de la uña (Pariser et al. 2013).
La elección del tratamiento depende de la presentación clínica, la gravedad de la enfermedad y el costo y duración del tratamiento. Los fármacos sistémicos utilizados –terbinafina, itraconazol y fluconazol– se asocian con efectos adversos significativos, que dificultan la prescripción para pacientes con problemas hepáticos o renales. Los medicamentos tópicos son más seguros pero ineficaces. En la práctica clínica pueden observarse pacientes con infecciones a largo plazo u onicomicosis crónica con alteraciones graves de la lámina ungueal, el lecho ungueal y la matriz. El estudio de Pariser et al. (2013) indica que la tasa de curación con ciclopirox tópico al 8% durante 48 semanas es del 5,5–8,5%. Por tanto, no se recomienda como monoterapia. Las tasas de curación con el tratamiento terapéutico con medicamentos sistémicos oscilan entre el 14% y el 54%, según el medicamento utilizado, la dosis y la duración de la administración.
Tratamiento con luz y láser
La aplicación de luces sobre tejidos y organismos puede generar respuestas tanto estimuladoras como inhibidoras según los parámetros utilizados. Algunos términos se utilizan para describir estos efectos, como bioestimulación, terapia con láser (o luz) de baja intensidad (LLLT), terapia con láser de baja intensidad, terapia con láser de baja potencia, láser frío, láser blando, fotobioestimulación y fotobiomodulación. El término más utilizado es terapia con láser de baja intensidad (LLLT), un término mencionado frecuentemente en Medical Subject Headings (MeSH), el tesauro de vocabulario controlado de la National Library of Medicine. La conferencia de la North American Association for Light Therapy y la World Association for Laser Therapy en septiembre de 2014 determinó por consenso que el término que mejor la designa es fotobiomodulación, propuesto para su inclusión en la sección MeSH de la National Library of Medicine (Anders et al. 2015).
El fotodaño por luz ultravioleta en bacterias y hongos sin el uso de un agente fotosensibilizador se demostró a principios de 1900 con lámparas que irradiaban longitudes de onda entre 226 y 328 nm (UVC + UVB). En 2002 se observó actividad germicida frente a patógenos procariotas y eucariotas; sin embargo, su uso se abandonó debido al efecto fotocarcinogénico en células humanas (Bornstein et al. 2009a). Desde entonces, se han estudiado otras longitudes de onda en el rango del infrarrojo cercano (NIR) del espectro electromagnético para lograr la fotoinactivación de patógenos, tanto con el uso de luz y un agente fotosensibilizador como con el uso de láser (Vural et al. 2008; Kosarev et al. 2010).
Los estudios de luz y láser con objetivos antimicrobianos han seguido trayectorias paralelas en áreas como la físicoquímica, la microbiología y la práctica clínica. Aunque los estudios en todo el espectro electromagnético están esclareciendo el comportamiento de ciertas longitudes de onda y algunas pruebas que utilizan láser en cultivos de T. rubrum y bacterias indican fotoinhibición de ciertos microorganismos, todavía faltan estudios in vitro que imiten las condiciones clínicas y estudios clínicos con muestras más amplias. Una de las dificultades es la gran variedad de presentaciones clínicas de las onicomicosis y las combinaciones de infecciones mixtas que forman biopelículas (Meral et al. 2003; Vural et al. 2008; Knappe et al. 2004; Pasquini 2003; Landsman et al. 2010).
Interacción del láser con la piel
La extensión e intensidad de la acción del láser sobre la piel dependen de la estructura del tejido, determinada por su contenido de agua y circulación sanguínea, que influyen en la absorción, dispersión, reflexión, conductividad térmica, capacidad calorífica y densidad, que a su vez están influidas por los parámetros del rayo láser (intensidad de energía y longitud de onda). Según la duración de la irradiación láser en los tejidos, las diferentes densidades de energía producen tres tipos de interacción: efectos fotoquímicos (10 s–1000 s; 10−3–1 W/cm2), efectos fototérmicos (1 ms–100 s; 1–106 W/cm2) y efectos de fotoionización y fotomecánicos (10 ps–100 ns; 108–1012 W/cm2). Los efectos fototérmicos y fotoquímicos se obtienen utilizando menos energía y con pulsos más largos que los utilizados para los efectos de fotoionización y fotomecánicos. Estos parámetros físicos son importantes para clasificar el tipo de equipo láser disponible y sus finalidades. De este modo, una misma longitud de onda puede estar indicada para diferentes afecciones clínicas según la energía del equipo y su capacidad para generar pulsos cortos o largos (Knappe et al. 2004).
El aumento de la temperatura y su distribución en el área expuesta a la radiación láser dependen de la energía absorbida por el tejido y sus propiedades térmicas. Según la temperatura alcanzada, se producen diferentes efectos. Cuando la temperatura alcanza 45 °C, no hay daño tisular irreversible. Temperaturas entre 45 y 50 °C generan alteraciones de las enzimas y edema. Temperaturas superiores a 60 °C durante unos segundos generan coagulación por desnaturalización de las proteínas del tejido, y temperaturas entre 90 y 100 °C causan vaporización del plasma celular (como con el láser de CO2) (Knappe et al. 2004).
Actualmente existen estudios sobre los efectos de láseres cuya longitud de onda se encuentra en el rango del infrarrojo cercano (NIR) del espectro electromagnético. Los láseres en el rango entre 700 y 1400 nm tienen en común la capacidad de penetrar profundamente en la dermis sin prácticamente dispersión de los haces de luz. Un estudio realizado con un sistema de láser de diodo a 870 nm y 930 nm demostró in vitro la fotoinactivación a temperaturas fisiológicas de Staphylococcus aureus, Escherichia coli, Candida albicans y Trichophyton rubrum al reducir el potencial de membrana y aumentar la generación de especies reactivas de oxígeno (ROS), sin efectos dañinos para las células humanas.
Un estudio clínico con el láser de diodo de 870 nm y 930 nm realizado por Landsman et al. (2010), basado en estudios previos de Bornstein, obtuvo mejora en casos de onicomicosis en el 63% de los casos seguidos durante 180 días, mediante 3 mm de crecimiento de las uñas tratadas y cultivos negativos para ácido peryódico-Schiff en el 30% de los casos (Landsman et al. 2010; Bornstein 2009; Bornstein et al. 2009). Las exposiciones se realizaron en dos aplicaciones de 2 min de duración y se acompañaron de medición de temperatura con un termómetro infrarrojo.
El láser Nd:YAG de 1064 nm
El láser Nd:YAG de 1064 nm se ha utilizado para la remodelación del colágeno (Dang et al. 2005; Koh et al. 2010; Dayan et al. 2003a, b; Schmults et al. 2004; Tan et al. 2004), tratamiento de la pseudofoliculitis de la barba (Ross et al. 2002) y granuloma piógeno, estimulación de la angiogénesis (Kipshidze et al. 2001) y como agente antibacteriano y antifúngico, como se observa en la fotobiomodulación realizada con luz visible e infrarrojo cercano (Guffey et al. 2014).
Se creó un nuevo modelo in vitro para estudiar la efectividad del láser Nd:YAG mediante la irradiación de uñas previamente esterilizadas y posteriormente contaminadas con biopelículas de Candida albicans y Fusarium oxysporum. La evaluación de las colonias por microscopía electrónica mostró una inhibición del 50% de la biopelícula de Candida albicans y del 100% de la biopelícula de Fusarium oxysporum, con presencia de orificios en la pared de este último microorganismo y vaciamiento de su contenido, lo que indica lesión de la pared fúngica. Las pruebas indicaron una viabilidad reducida de las colonias de Candida albicans y Fusarium oxysporum estudiadas (Vila et al. 2014).
El láser Nd:YAG se utiliza en casos en los que la medicación sistémica está contraindicada, como cuando el crecimiento de la uña es lento (debido a problemas circulatorios, diabetes, traumatismos, etc.). El láser Nd:YAG de 1064 nm pertenece a un rango del espectro electromagnético caracterizado por la capacidad de penetrar profundamente en la piel con poca disipación y dispersión, y tiene a la hemoglobina y al agua como cromóforos diana conocidos y poca afinidad por la melanina. De este modo, puede utilizarse con seguridad en fototipos altos (IV, V, VI).
Dayan et al. (2003b) indican que el láser Nd:YAG estimula la formación de fibras de colágeno y mejora la microcirculación (Bornstein 2009; Dayan et al. 2003a, b). El láser Nd:YAG de 1064 nm facilita la revascularización de las extremidades mediante un efecto no térmico. Clínicamente, existe estimulación del crecimiento de la uña y mejora de su estructura y vascularización, por lo que se utiliza en casos de crecimiento lento de la uña u onicosquicia.
Cuando hay dermatofitomas (abscesos fúngicos adherentes protegidos por biopelículas y refractarios al tratamiento antifúngico oral), se recomienda el desbridamiento químico o quirúrgico. Puede realizarse con urea al 40% o recortando la uña con un láser de CO2.
El láser Nd:YAG de submilisegundo puede utilizarse en el tratamiento de las uñas. Según el equipo, puede usarse con un punto de 5 o 6 mm, lo que permite una buena dispersión del láser en el área tratada con una curva gaussiana reducida (que concentra la energía en el centro del punto), formando un perfil top-hat, con menos julios y penetración más profunda que los puntos más pequeños.
Aunque los estudios clínicos utilizan muestras pequeñas, el tratamiento con láser Nd:YAG puede ser una alternativa utilizada sola o en combinación con otros tratamientos (Sá Guimarães 2014). Actualmente, algunos equipos de láser de granate de itrio-aluminio dopado con neodimio (Nd:YAG) han sido aprobados para el blanqueamiento temporal de las uñas: Pinpointe Footlaser (Nuvolase), GenesisPlus (Cutera), Q-Clear (Light Age), CoolTouch VARIA (CoolTouch) y Joule ClearSense (Sciton) (Ortiz et al. 2014; Kimura et al. 2012; Hochman et al. 2011). La punta Joule ClearSense (equipo Sciton) emite un punto de 6 mm, con una fluencia que va de 5 a 6 J/cm2, duración de pulso de 0,3 ms, 4,0 Hz y control de temperatura en tiempo real medido a través del termómetro infrarrojo integrado en la pieza de mano. La aplicación se realiza en círculos concéntricos repetidos hasta alcanzar una temperatura entre 42 y 44 °C. Se realizan tres sesiones iniciales con intervalos semanales, seguidas de seguimiento hasta el crecimiento completo de las uñas tratadas, con intervalos que van de 1 a 3 meses según la intensidad de la afectación ungueal y la mejora clínica (fig. 9).
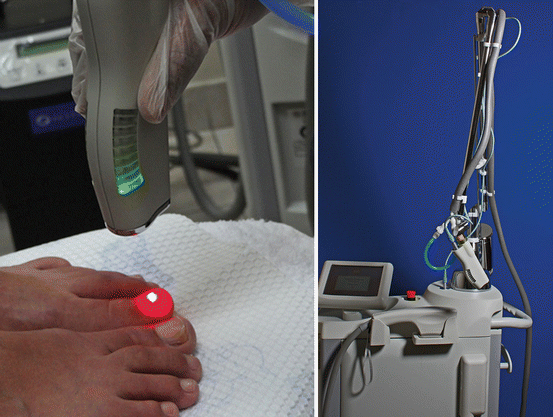
La prevención de recurrencias puede lograrse con la aplicación a largo plazo de polvo antifúngico con miconazol al 2% en los pies y el calzado (Warshaw et al. 2005). Esta medida trata y previene el pie de atleta tipo mocasín, usualmente causado por T. rubrum o T. mentagrophytes (interdigitalis).
El láser de CO2 de 10 600 nm
El láser de CO2 tiene al agua como principal cromóforo. En modo continuo se utiliza en puntos paralelos (3 o 4 W, en modo continuo, con control del corte perpendicular al pie) para cortar la lámina preservando el lecho ungueal. Cortar la uña hiperqueratósica facilita la toma de material para cultivo y el desbridamiento quirúrgico.
El uso experimental del láser de CO2 fraccional como medio de liberación de fármacos fue descrito por Haedersdal et al. (2010). En este experimento se utilizó metil 5-aminolevulinato (MAL), un precursor de porfirina, como fármaco de prueba. Se observó una absorción significativa en la profundidad de la piel, con creación de canales intradérmicos por el láser de 3 mm y una mayor concentración de porfirina en los folículos pilosos debido a la difusión de MAL en el área probada (Haedersdal et al. 2010).
El láser de CO2 fraccional puede utilizarse en el tratamiento de la onicomicosis causada por Fusarium spp., con aplicación (12 W, espaciado de 1000 μm, duración de pulso de 700 μs y cinco pasadas; Smartxide, láser Deka) a lo largo de toda la lámina ungueal y el eponiquio, seguido de la aplicación de una crema con tetraciclina y anfotericina B tópica (apósito oclusivo por la noche) (Lurati et al. 2011), seguido de cepillado matutino con peróxido de hidrógeno de 10 volúmenes (Garcez et al. 2010) hasta el crecimiento completo de la uña. La aplicación de anfotericina B produce una pigmentación marrón en la parte enferma de la uña, donde hay detritos de apariencia deshidratada. Esta coloración sirve como cromóforo auxiliar para la aplicación del láser Nd:YAG, causando una mayor concentración de calor en estas áreas.
Conclusiones
Anders et al. (2015) sugieren que el término terapia de fotobiomodulación sería «una forma de terapia con luz que utiliza formas no ionizantes de fuentes de luz, incluidos láseres, LED y luz de banda ancha, en la luz visible e infrarroja. Es un proceso no térmico que involucra cromóforos endógenos que promueven eventos fotofísicos y fotoquímicos en múltiples escalas biológicas». Esta terapia se aplica para reducir el dolor y la inflamación, y para la modulación inmune, y promueve la cicatrización de heridas y regeneración tisular (Anders et al. 2015). Meral et al. (2003), Ortiz et al. (2014), Vila et al. (2014) y Vural et al. (2008) encontraron que las luces y los láseres utilizados en fotobiomodulación son capaces de inhibir el crecimiento bacteriano y fúngico. Los estudios de investigación apenas comienzan y seguramente aportarán nuevas soluciones a las infecciones causadas por biopelículas de diferentes orígenes.
Mensajes clave
- La tasa de curación clínica con medicamentos orales alcanza apenas algo más del 50% de los casos, mientras que los tratamientos tópicos no alcanzan tasas de curación del 20%.
- Los hongos no dermatofitos han mostrado una incidencia creciente y se consideran más difíciles de tratar.
- Se demostró in vitro la formación de biopelículas en el principal agente causal de la onicomicosis.
- El láser Nd:YAG estimula la formación de fibras de colágeno, mejora la microcirculación y actúa como agente antibacteriano y antifúngico.
- El láser de CO2 fraccional puede utilizarse para la liberación de fármacos.
Referencias
Anders JJ, Lanzafame RJ, Arany PR. Low-level light/laser therapy versus photobiomodulation therapy. Photomed Laser Surg. 2015;33(4):183–4.
Andes DR, Nett J, Oschel P, Albrecht R, Marchillo K, Pitula A. Development and characterization of an in vivo central venous catheter Candida albicans biofilm model. Infect Immun. 2004;72:6023–31.
Araujo AJG, Souza MAJ. Onicomicoses por fungos emergentes: análise crítica, diagnóstico laboratorial e revisão. An Bras Dermatol. 2003;78(4):445–55.
Bizerra FC, Nakamura CV, De Poersch C, Estivalet Svidzinski TI, Borsato Quesada RM, Goldenberg S, Krieger MA, Yamada-Ogatta SF. Characteristics of biofilm formation by Candida tropicalis and antifungal resistance. FEMS Yeast Res. 2008;8:442–50.
Bloom W, Fawcett DW. Tratado de Histologia. Rio de Janeiro: Interamericana; 1977.
Bornstein E. A review of current research in light-based technologies for treatment of podiatric infectious disease states. JAPMA. 2009;99:348–52.
Bornstein ES, Hermann W, Gridley S. Near-infrared photoinactivation of bacteria and fungi at physiologic temperatures. Photochem Photobiol. 2009a;85:1364–74.
Bornstein E, Hermans W, Gridley S, Manni J. Near-infrared photoinactivation of bacteria and fungi at physiologic temperatures. Photochem Photobiol. 2009b;85:1364–74.
Bueno JG, Martinez C, Zapata B, Sanclemente G, Gallego M, Mesa AC. In vitro activity of fluconazole, itraconazole, voriconazole and terbinafine against fungi causing onychomycosis. Clin Exp Dermatol. 2010;35:658–63.
Burkhart CN, Burkhart CG, Gupta AK. Dermatophytoma: recalcitrance to treatment because of existence of fungal biofilm. J Am Acad Dermatol. 2002;47:629–31.
Cannizzo FT, Eraso E, Ezkurra PA, Villar-Vidal M, Bollo E, Castellá G, Cabañes FJ, Vidotto V, Quindós G. Biofilm development by clinical isolates of Malassezia pachydermatis. Med Mycol. 2007;45:357–61.
Carney C, Tosti A, Daniel R, Scher R, Rich P, DeCoster J, Elewski B. A new classification system for grading the severity of onychomycosis. Arch Dermatol. 2011;147(11):1277–82.
Chandra J, Kuhn DM, Mukherjee PK, Hoyer LL, McCormick T, Ghannoum MA. Biofilm formation by the fungal pathogen Candida albicans: development, architecture, and drug resistance. J Bacteriol. 2001;183:5385–94.
Chiacchio N, Kadunc BV, Almeida ART, Madeira CL. Nail abrasion. J Cosmet Dermatol. 2004;2:150–2.
Costa-Orlandi CB, Sardi JCO, Santos CT, Fusco-Almeida AM, Mendes-Giannini MJS. In vitro characterization of Trichophyton rubrum and T. mentagrophytes biofilms. Biofouling. 2014;30:719–27.
Costerton JW, Lewandowski Z, Caldwell DE, Korber DR, Lappin-Scott HM. Microbial biofilms. Annu Rev Microbiol. 1995;49:711–45.
Cushion MT, Collins MS, Linke MJ. Biofilm formation by Pneumocystis spp. Eukaryot Cell. 2009;8:197–206.
D’Antonio D, Parruti G, Pontieri E, Di Bonaventura G, Manzoli L, Sferra R, Vetuschi A, Piccolomini R, Romano F, Staniscia T. Slime production by clinical isolates of Blastoschizomyces capitatus from patients with hematological malignancies and catheter-related fungemia. Eur J Clin Microbiol Infect Dis. 2004;23:787–9.
Dang YY, Ren QS, Liu HX, Ma JB, Zhang JS. Comparison of histologic, biochemical and mechanical properties of murine skin treated with 1,064 nm and 1,320 nm Nd:YAG lasers. Exp Dermatol. 2005;14:876–82.
Davis LE, Cook G, Costerton JW. Biofilm on ventriculoperitoneal shunt tubing as a cause of treatment failure in coccidioidal meningitis. Emerg Infect Dis. 2002;8:376–9.
Dayan SH, Vartanian J, Mernaker G, Mobley SR, Dayan AN. Nonablative laser resurfacing using the low-pulse (1,064 nm) Nd:YAG laser. Arch Facial Plast Surg. 2003a;5:310–5.
Dayan S, Damrose JF, Bhattacharyya K, Mobley SR, Patel MK, O’Grady K, Mandrea S. Histological evaluations following 1,064 nm Nd:YAG laser resurfacing. Lasers Surg Med. 2003b;33:126–31.
de Araújo AJ, Souza MAJ, Bastos OM, de Oliveira JC. Ocorrência de onicomicose em pacientes atendidos em consultórios dermatológicos da cidade do Rio de Janeiro. An Bras Dermatol. 2003;78:299–308.
Di Bonaventura G, Pompilio A, Picciani C, Iezzi M, D’Antonio D, Piccolomini R. Biofilm formation by the emerging fungal pathogen Trichosporon asahii: development, architecture, and antifungal resistance. Antimicrob Agents Chemother. 2006;50:3269–76.
Donlan RM, Costerton JW. Biofilms: survival mechanisms of clinically relevant microorganisms. Clin Microbiol Rev. 2002;15:167–93.
Ferreira JAG, Carr JH, Starling CEF, de Resende MA, Donlan RM. Biofilm formation and effect of caspofungin on biofilm structure of Candida species bloodstream isolates. Antimicrob Agents Chemother. 2009;53:4377–84.
Finch J, Arenas R, Baran R. Fungal melanonychia. J Am Acad Dermatol. 2012;66(5):830–41.
Flemming HC, Wingender J. The biofilm matrix. Nat Rev Microbiol. 2010;8:623–33.
Garcez AS, Núñez SC, Baptista MS, Daghastanli NA, Itri R, Hamblin MR, Ribeiro MS. Antimicrobial mechanisms behind the photodynamic effect in the presence of hydrogen peroxide. Photochem Photobiol Sci. 2010;10(4):483–90.
Ghannoum MA, Hajjeh RA, Scher R, Konnikov N, Gupta AK, Summerbell R, Sullivan S, Daniel R, Krusinski P, Fleckman P, Rich P, Odom R, Aly R, Parise D, Zaiac M, Rebell G, Lesher J, Gerlach B. A large-scale North American study of fungal isolates from nails: the frequency of onychomycosis, fungal distribution, and antifungal susceptibility patterns. J Am Acad Dermatol. 2000;43(4):641–8.
Guffey JS, Motts S, Payne W. Using visible and near-IR light to facilitate photobiomodulation: a review of current research. Eur J Acad Essay. 2014;1(3):113–6.
Haedersdal M, Sakamoto FH, Farinelli WA, Doukas AG, Tam J, Anderson RR. Fractional CO2 laser-assisted drug delivery. Lasers Surg Med. 2010;42:113–22.
Hawser SP, Douglas LJ. Biofilm formation by Candida species on the surface of catheter materials in vitro. Infect Immun. 1994;62:915–21.
Hochman LG. Laser treatment of onychomycosis using a novel 0.65-millisecond pulsed Nd:YAG 1,064-nm laser. J Cosmet Laser Ther. 2011;13:2–5.
Hwang SM, Suh MK, Ha GY. Onychomycosis due to nondermatophytic molds. Ann Dermatol. 2012;24(2):175–80.
Imamura Y, Chandra J, Mukherjee PK, Lattif AA, Szczotka-Flynn LB, Pearlman E, Lass JH, O’Donnell K, Ghannoum MA. Fusarium and Candida albicans biofilms on soft contact lenses: model development, influence of lens type, and susceptibility to lens care solutions. Antimicrob Agents Chemother. 2008;52:171–82.
Kimura U, et al. Treating onychomycosis of the toenail: clinical efficacy of the sub-millisecond 1,064 nm Nd:YAG laser using a 5 mm spot diameter. J Drugs Dermatol. 2012;11(4):496–504.
Kipshidze N, Nikolaychik V, Muckerheide M, Keelan MH, Chekanov V, Maternowski M, Chawla P, Hernandez I, Iyers S, Danga G, Sahota H, Leon MB, Rowbin G, Moses JW. Effect of short-pulsed nonablative infrared laser irradiation on vascular cells in vitro and neointimal hyperplasia in a rabbit balloon injury model. Circulation. 2001;104:1850–5.
Knappe V, Frank F, Rohde E. Principles of lasers and biophotonic effects. Photomed Laser Surg. 2004;22(5):411–7.
Koh BK, Lee CK, Chae K. Photorejuvenation with submillisecond neodymium-doped yttrium aluminum garnet (1,064 nm) laser: a 24-week follow-up. Dermatol Surg. 2010;36:1–8.
Kosarev J, Vizintin Z. Novel laser therapy in treatment of onychomycosis. J LAHA. 2010;1:1–8.
Kuhn DM, George T, Chandra J, Mukherjee PK, Ghannoum MA. Antifungal susceptibility of Candida biofilms: unique efficacy of amphotericin B lipid formulations and echinocandins. Antimicrob Agents Chemother. 2002a;46:1773–80.
Kuhn DM, Chandra J, Mukherjee PK, Ghannoum MA. Mechanism of fluconazole resistance in Candida albicans biofilms: phase-specific role of efflux pumps and membrane sterols. Infect Immun. 2002b;71:878–88.
Kumamoto CA. Candida biofilms. Curr Opin Microbiol. 2002;5:608–11.
Landsman AS, Robbins AH, Angelini PF, Wu CC, Cook J, Oster M, Bornstein ES. Treatment of mild, moderate, and severe onychomycosis using 870 and 930 nm light exposure. J Am Podiatr Med Assoc. 2010;100(3):166–77.
Lattif AA, Mukherjee PK, Chandra J, Swindell K, Lockhart SR, Diekema DJ, Pfaller MA, Ghannoum MA. Characterization of biofilms formed by Candida parapsilosis, C. metapsilosis, and C. orthopsilosis. Int J Med Microbiol. 2010;300:265–70.
Lattif AA, Mukherjee PK, Chandra J, Roth MR, Welti R, Rouabhia M, Ghannoum MA. Lipidomics of Candida albicans biofilms reveals phase-dependent production of phospholipid molecular classes and a role for lipid rafts in biofilm formation. Microbiology. 2011;157:3232–42.
Liu D, Coloe S, Baird R, Pedersen J. Application of PCR to the identification of dermatophyte fungi. J Med Microbiol. 2000;49:493–7.
Lurati M, Rosselet FB, Vernez M, Spring P, Bontems O, Fratti M, Monod M. Efficacious treatment of non-dermatophyte mould onychomycosis with topical amphotericin B. Dermatology. 2011;223:289–92.
Martinez LR, Casadevall A. Cryptococcus neoformans biofilm formation depends on surface support and carbon source and reduces fungal cell susceptibility to heat, cold, and UV light. Appl Environ Microbiol. 2007;73:4592–601.
Martins M, Uppuluri P, Thomas DP, Cleary IA, Henriques M, Lopez-Ribot JL, Oliveira R. Presence of extracellular DNA in the Candida albicans biofilm matrix and its contribution to biofilms. Mycopathologia. 2009;169:323–31.
Martins M, Henriques M, Lopez-Ribot JL, Oliveira R. Addition of DNase improves the in vitro activity of antifungal drugs against Candida albicans biofilms. Mycoses. 2012;55:80–5.
Meral G, et al. Factors affecting the antibacterial effects of Nd:YAG laser in vivo. Lasers Surg Med. 2003;32:197–202.
Montagna W, Parakkal LPF. The structure and function of skin. New York: Academic; 1974.
Morales-Cardona CA, Valbuena-Mesa MC, Alvarado Z, Solorzano-Amador A. Non-dermatophyte mould onychomycosis: a clinical and epidemiological study at a dermatology referral centre in Bogota, Colombia. Mycoses. 2014;57:284–93.
Mowat E, Williams C, Jones B, McChlery S, Ramage G. The characteristics of Aspergillus fumigatus mycetoma development: is this a biofilm? Med Mycol. 2009;47(Suppl 1):S120–6.
Mukherjee PK, Chandra J. Candida biofilm resistance. Drug Resist Updat. 2004;7:301–9.
Mukherjee PK, Chandra J, Yu C, Sun Y, Pearlman E, Ghannoum MA. Characterization of Fusarium keratitis outbreak isolates: contribution of biofilms to antimicrobial resistance and pathogenesis. Invest Ophthalmol Vis Sci. 2012;53:4450–7.
Nett JE, Crawford K, Marchillo K, Andes DR. Role of Fks1p and matrix glucan in Candida albicans biofilm resistance to an echinocandin, pyrimidine, and polyene. Antimicrob Agents Chemother. 2010a;54:3505–8.
Nett JE, Sanchez H, Cain MT, Andes DR. Genetic basis of Candida biofilm resistance due to drug-sequestering matrix glucan. J Infect Dis. 2010b;202:171–5.
Nucci M, Anaissie E. Fusarium infections in immunocompromised patients. Clin Microbiol Rev. 2007;20:695–704.
Nunes JM, Bizerra FC, Ferreira RCE, Colombo AL. Molecular identification, antifungal susceptibility profile, and biofilm formation of clinical and environmental Rhodotorula species isolates. Antimicrob Agents Chemother. 2013;57:382–9.
Nusbaum AG, Kirsner RS, Charles CA. Biofilms in dermatology. Skin Therapy Lett. 2012;17:1–5.
Ortiz AE, Avram MM, Wanner MA. A review of lasers and light for the treatment of onychomycosis. Lasers Surg Med. 2014;46:117–24.
Ortoneda M, Capilla J, Pastor FJ, Pujol I, Guarro J. In vitro interactions of licensed and novel antifungal drugs against Fusarium spp. Diagn Microbiol Infect Dis. 2004;48:69–71.
Pariser D, Elewski B, Rich P, Scher RK. Update on onychomycosis: effective strategies for diagnosis and treatment. Semin Cutan Med Surg. 2013;32(2S):S1–13.
Pasquini C. Near-infrared spectroscopy: fundamentals, practical aspects and analytical applications. J Braz Chem Soc. 2003;14(2):198–219.
Perumal P, Mekala S, Chaffin WL. Role for cell density in antifungal drug resistance in Candida albicans biofilms. Antimicrob Agents Chemother. 2007;51:2454–63.
Pitangui NS, Sardi JCO, Silva JF, Benaducci T, Moraes da Silva RA, Rodríguez-Arellanes G, Taylor ML, Mendes-Giannini MJS, Fusco-Almeida AM. Adhesion of Histoplasma capsulatum to pneumocytes and biofilm formation on an abiotic surface. Biofouling. 2012;28:711–8.
Ramage G, Van de Walle K, Wickes BL, Lopez-Ribot JL. Characteristics of biofilm formation by Candida albicans. Rev Iberoam Micol. 2001;18:163–70.
Ramage G, Bachmann S, Patterson TF, Wickes BL, López-Ribot JL. Investigation of multidrug efflux pumps in relation to fluconazole resistance in Candida albicans biofilms. J Antimicrob Chemother. 2002;49:973–80.
Ramage G, Saville SP, Thomas DP, López-Ribot JL. Candida biofilms: an update. Eukaryot Cell. 2005;4:633–8.
Ramage G, Rajendran R, Sherry L, Williams C. Fungal biofilm resistance. Int J Microbiol. 2012;2012:1–14.
Ranawaka RR, Silva N, Ragunathan RW. Non-dermatophyte mold onychomycosis in Sri Lanka. Dermatol Online J. 2012;18(1):7.
Reynolds TB, Fink GR. Bakers’ yeast, a model for fungal biofilm formation. Science. 2001;291:878–81.
Ross V, Cooke LM, Timko AL, Overstreet KA, Graham BS, Barnette DJ. Treatment of pseudofolliculitis barbae in skin types IV, V, and VI with a long-pulsed neodymium:yttrium aluminum garnet laser. J Am Acad Dermatol. 2002;47:263–70.
Sá Guimarães CMD. Tratamento da onicomicose com laser Nd:YAG: resultados em 30 pacientes. Surg Cosmet Dermatol. 2014;6(2):155–60.
Sardi JCO, Pitangui NDS, Rodríguez-Arellanes G, Taylor ML, Fusco-Almeida AM, Mendes-Giannini MJS. Highlights in pathogenic fungal biofilms. Rev Iberoam Micol. 2014;31:22–9.
Scher RK, Tavakkol A, Sigurgeirsson B. Onychomycosis: diagnosis and definition of cure. J Am Acad Dermatol. 2007;56:939–44.
Schmults CD, Phelps R, Goldberg DJ. Nonablative facial remodeling. Arch Dermatol. 2004;140:1373–6.
Seneviratne C, Jin L, Samaranayake L. Biofilm lifestyle of Candida: a mini review. Oral Dis. 2008;14:582–90.
Sigurgeirsson B. Prognostic factors for cure following treatment of onychomycosis. J Eur Acad Dermatol Venerol. 2010;24:679–84.
Silva S, Negri M, Henriques M, Oliveira R, Williams DW, Azeredo J. Adherence and biofilm formation of non-Candida albicans Candida species. Trends Microbiol. 2011;19:241–7.
Singh R, Shivaprakash MR, Chakrabarti A. Biofilm formation by zygomycetes: quantification, structure and matrix composition. Microbiology. 2011;157:2611–8.
Snell RS. Histologia Clínica. Rio de Janeiro: Interamericana; 1985.
Tan M, Dover J, Hsu T, Arndt KA, Stewart B. Clinical evaluation of enhanced nonablative skin rejuvenation using a combination of 532 nm and 1,064 nm laser. Lasers Surg Med. 2004;34:349–55.
Vediyappan G, Rossignol T, d’Enfert C. Interaction of Candida albicans biofilms with antifungals: transcriptional response and binding of antifungals to beta-glucans. Antimicrob Agents Chemother. 2010;54:2096–111.
Vila TVM, Rosental S, de Sá Guimarães CMD. A new model of in vitro fungal biofilms formed on human nail fragments allows reliable testing of laser and light therapies against onychomycosis. Lasers Med Sci. 2014;30(3):1031–9.
Vlassova N, Han A, Zenilman JM, James G, Lazarus GS. New horizons for cutaneous microbiology: the role of biofilms in dermatological disease. Br J Dermatol. 2011;165:751–9.
Vural E, Winfield HL, Shingleton AW, Horn TD, Shafirstein B. The effects of laser irradiation on Trichophyton rubrum growth. Lasers Med Sci. 2008;23:349–53.
Warshaw EM, St. Clair KR. Prevention of onychomycosis reinfection for patients with complete cure of all 10 toenails: results of a double-blind, placebo-controlled pilot study of prophylactic miconazole powder 2%. J Am Acad Dermatol. 2005;53(4):717–20.
Weiss L, Greep RO. Histology. New York: McGraw-Hill; 1977.
Zarnowski R, Westler WM, Lacmbouh GA, Marita JM, Bothe JR, Bernhardt J, Lounes-Hadj AS, Fontaine J, Sanchez H, Hatfield RD, et al. Novel entries in a fungal biofilm matrix encyclopedia. MBio. 2014;5:1333–14.
Zhang X, Sun X, Wang Z, Zhang Y, Hou W. Keratitis-associated fungi form biofilms with reduced antifungal drug susceptibility. Invest Ophthalmol Vis Sci. 2012;53:7774–8.